

1. 서 론
2. 연구 방법
2.1 실규모 격자형 버드나무 생육장 구축
2.2 이산화탄소 흡수량 산정
3. 결과 및 고찰
3.1 수령별 생장 특성과 생물량 배분
3.2 수령 및 증가량 기반 이산화탄소 흡수량
3.3 상대생장식
3.4 선행연구 통합 재산정 및 수령-밀도 상호작용
4. 결 론
1. 서 론
기후변화로 인해 홍수와 가뭄과 같은 수문학적 극한 현상의 발생이 증가하고 있으며, 이에 대응하기 위한 수자원 관리의 중요성이 커지고 있다(Sadoff and Muller 2009). 수문학적 극한 현상에 대응하기 위한 전략으로 자연기반해법(Nature-based Solutions, NbS)이 주목받고 있으며, 홍수피해 저감과 기후완화 효과가 동시에 나타나는 것으로 보고되고 있다(Sutton-Grier et al. 2015, Chausson et al. 2020, Seddon et al. 2020, Amirzada et al. 2023). 수변 식생은 하천 및 수변공간에 적용 가능한 대표적인 자연기반해법으로, 물 순환 과정에 관여하며 홍수 피해 저감, 생태서식처 제공, 탄소 격리 등의 다양한 서비스를 제공한다(Tabacchi et al. 2000, Rowiński et al. 2018, Özgenç 2024). 그 중 버드나무속(Salix)은 하천 교란 환경에 적응한 대표적인 수변 목본식생이며(Karrenberg et al. 2002), 빠른 생장, 높은 재생 능력, 영양번식의 용이성, 탄소 흡수 잠재력 등을 바탕으로 수변 복원 및 완충공간 조성에 활용되어 왔다(Shields Jr et al. 1995, Lee 2025). 특히 선버들(Salix nipponica)은 국내 하천 및 수변구역에서 우점하는 대표적인 목본성 식생종으로 보고되어 왔고(Kim 2006, Myung 2009, Han et al. 2010, Choi et al. 2023, Kim 2024), 퇴적, 침식, 토양 유실, 홍수와 같은 교란 조건에 적응하며 생장을 지속하는 개척식물로 제시되었다(Cho 2012). 이러한 빠른 생장과 높은 군락 형성 능력은 선버들이 수변구역에서 상당한 생물량을 축적할 수 있음을 의미하며, 이에 따라 선버들의 수변 탄소 흡수원으로서의 잠재력이 주목받고 있다(Lee 2025).
선버들이 실제로 수행하는 탄소 흡수 기능을 정량적으로 평가하기 위해서는 생장 특성과 생물량 자료의 확보가 선행되어야 한다. 생물량은 토양 위의 줄기, 가지, 잎 등을 포함한 지상부 생물량(above-ground biomass, AGB)과 뿌리 생물량에 해당하는 지하부 생물량(below- ground biomass, BGB)으로 구분된다(IPCC 2006). 지상부 생물량은 상대적으로 조사와 추정이 용이한 반면, 지하부 생물량은 뿌리 굴취 방법의 한계와 이에 따른 자료 부족으로 인해 확보가 어렵고 추정 불확실성이 크게 나타날 수 있다(Cairns et al. 1997, Clark et al. 2001, Mokany et al. 2006). 지하부 생물량은 뿌리 시스템을 통해 토양 안정화, 유기물 공급 및 생지화학적 순환에 기여한다(Sleight et al. 2023). 그러나 국내 선버들 군락을 대상으로 수행한 기존 연구는 주로 지상부에 초점을 두었으며, 지하부 생물량을 포함한 총 생물량 기반의 이산화탄소 흡수량 평가는 충분히 이루어지지 않았다(Kim et al. 1999, Kim 2006, Han et al. 2010, Cho 2012, Kim 2024). 따라서 탄소 저장량 및 이산화탄소 흡수량 추정의 불확실성을 줄이기 위하여 지상부와 지하부 생물량을 모두 포함하는 직접수확 기반 자료를 확보할 필요가 있다(IPCC 2006, Jo and Ahn 2012). 또한 생물량 기반 이산화탄소 흡수량은 일반적으로 연 단위로 산정되지만, 이때 활용되는 생산량을 산정하는 방식은 일관되어 있지 않다(Kim 2006, Han et al. 2010, Kim 2024). 따라서 연구 간 이산화탄소 흡수량 비교 시에는 산정 범위와 생산량 산정 방법을 함께 고려할 필요가 있다. 국외에서는 Salix를 대상으로 한 단벌기 맹아림(short rotation coppice/forestry) 연구를 통해 생물량 추정 절차와 종 및 클론별 상대생장식(allometric equation)이 축적되어 왔으나(Verwijst and Telenius 1999, Arevalo et al. 2007, Sleight et al. 2023), 국내 자생 선버들을 대상으로 지하부를 포함하여 도출된 종 고유 상대생장식은 보고된 바가 없다.
이러한 생산량과 생물량 축적 및 탄소 저장 양상은 다양한 요인의 영향을 받으며, 그중에서 수령이 주요한 요인으로 작용한다(Pregitzer and Euskirchen 2004). 선버들은 수령 증가에 따라 생장 양상이 변화한다(Lee et al. 2002, Han et al. 2010). 그러나 자연 상태의 군락에서는 확장과 고사, 개체 간 경쟁과 자기솎음, 서로 다른 수령 개체의 혼재가 동시에 나타나 영향을 줄 수 있다(Kim et al. 1999, Jung 2019, Kim 2024). 이러한 조건은 수령에 따른 이산화탄소 흡수량 변화를 다른 환경적·군락구조적 요인과 분리하여 해석하는 데 어려움을 야기한다. 따라서 수령이 명확히 구분되고 생육 환경을 관리할 수 있는 환경에서 자료를 확보할 필요가 있다(Peichl and Arain 2007).
본 연구는 격자형 야외 버드나무 생육장에서 생육한 1–3년생 선버들을 대상으로 수령별 생장 특성과 생물량을 조사하고, 직접수확으로 확보한 지상부 및 지하부 생물량 자료를 바탕으로 수령별 이산화탄소 흡수량을 추정하는 것을 목적으로 한다. 아울러 개체별 자료를 이용하여 기저직경 기반의 종 고유 상대생장식을 도출함으로써 비파괴적 생물량 추정의 근거를 제시하고, 생물량 기반의 이산화탄소 흡수량 산정 결과를 기존 선행연구 및 타 수종 자료와 비교함으로써 선버들의 탄소 축적 수준과 수령에 따른 변화 양상을 상대적으로 해석하고자 하였다. 이러한 비교 분석은 선버들이 수변구역에서 탄소 흡수 기능을 수행할 수 있는 수준과 적용 가능 범위를 판단하는 근거를 제공한다. 본 연구의 결과는 수변구역에서 선버들을 활용한 탄소 흡수원 조성 및 평가를 위한 기초자료로 활용될 수 있다.
2. 연구 방법
2.1 실규모 격자형 버드나무 생육장 구축
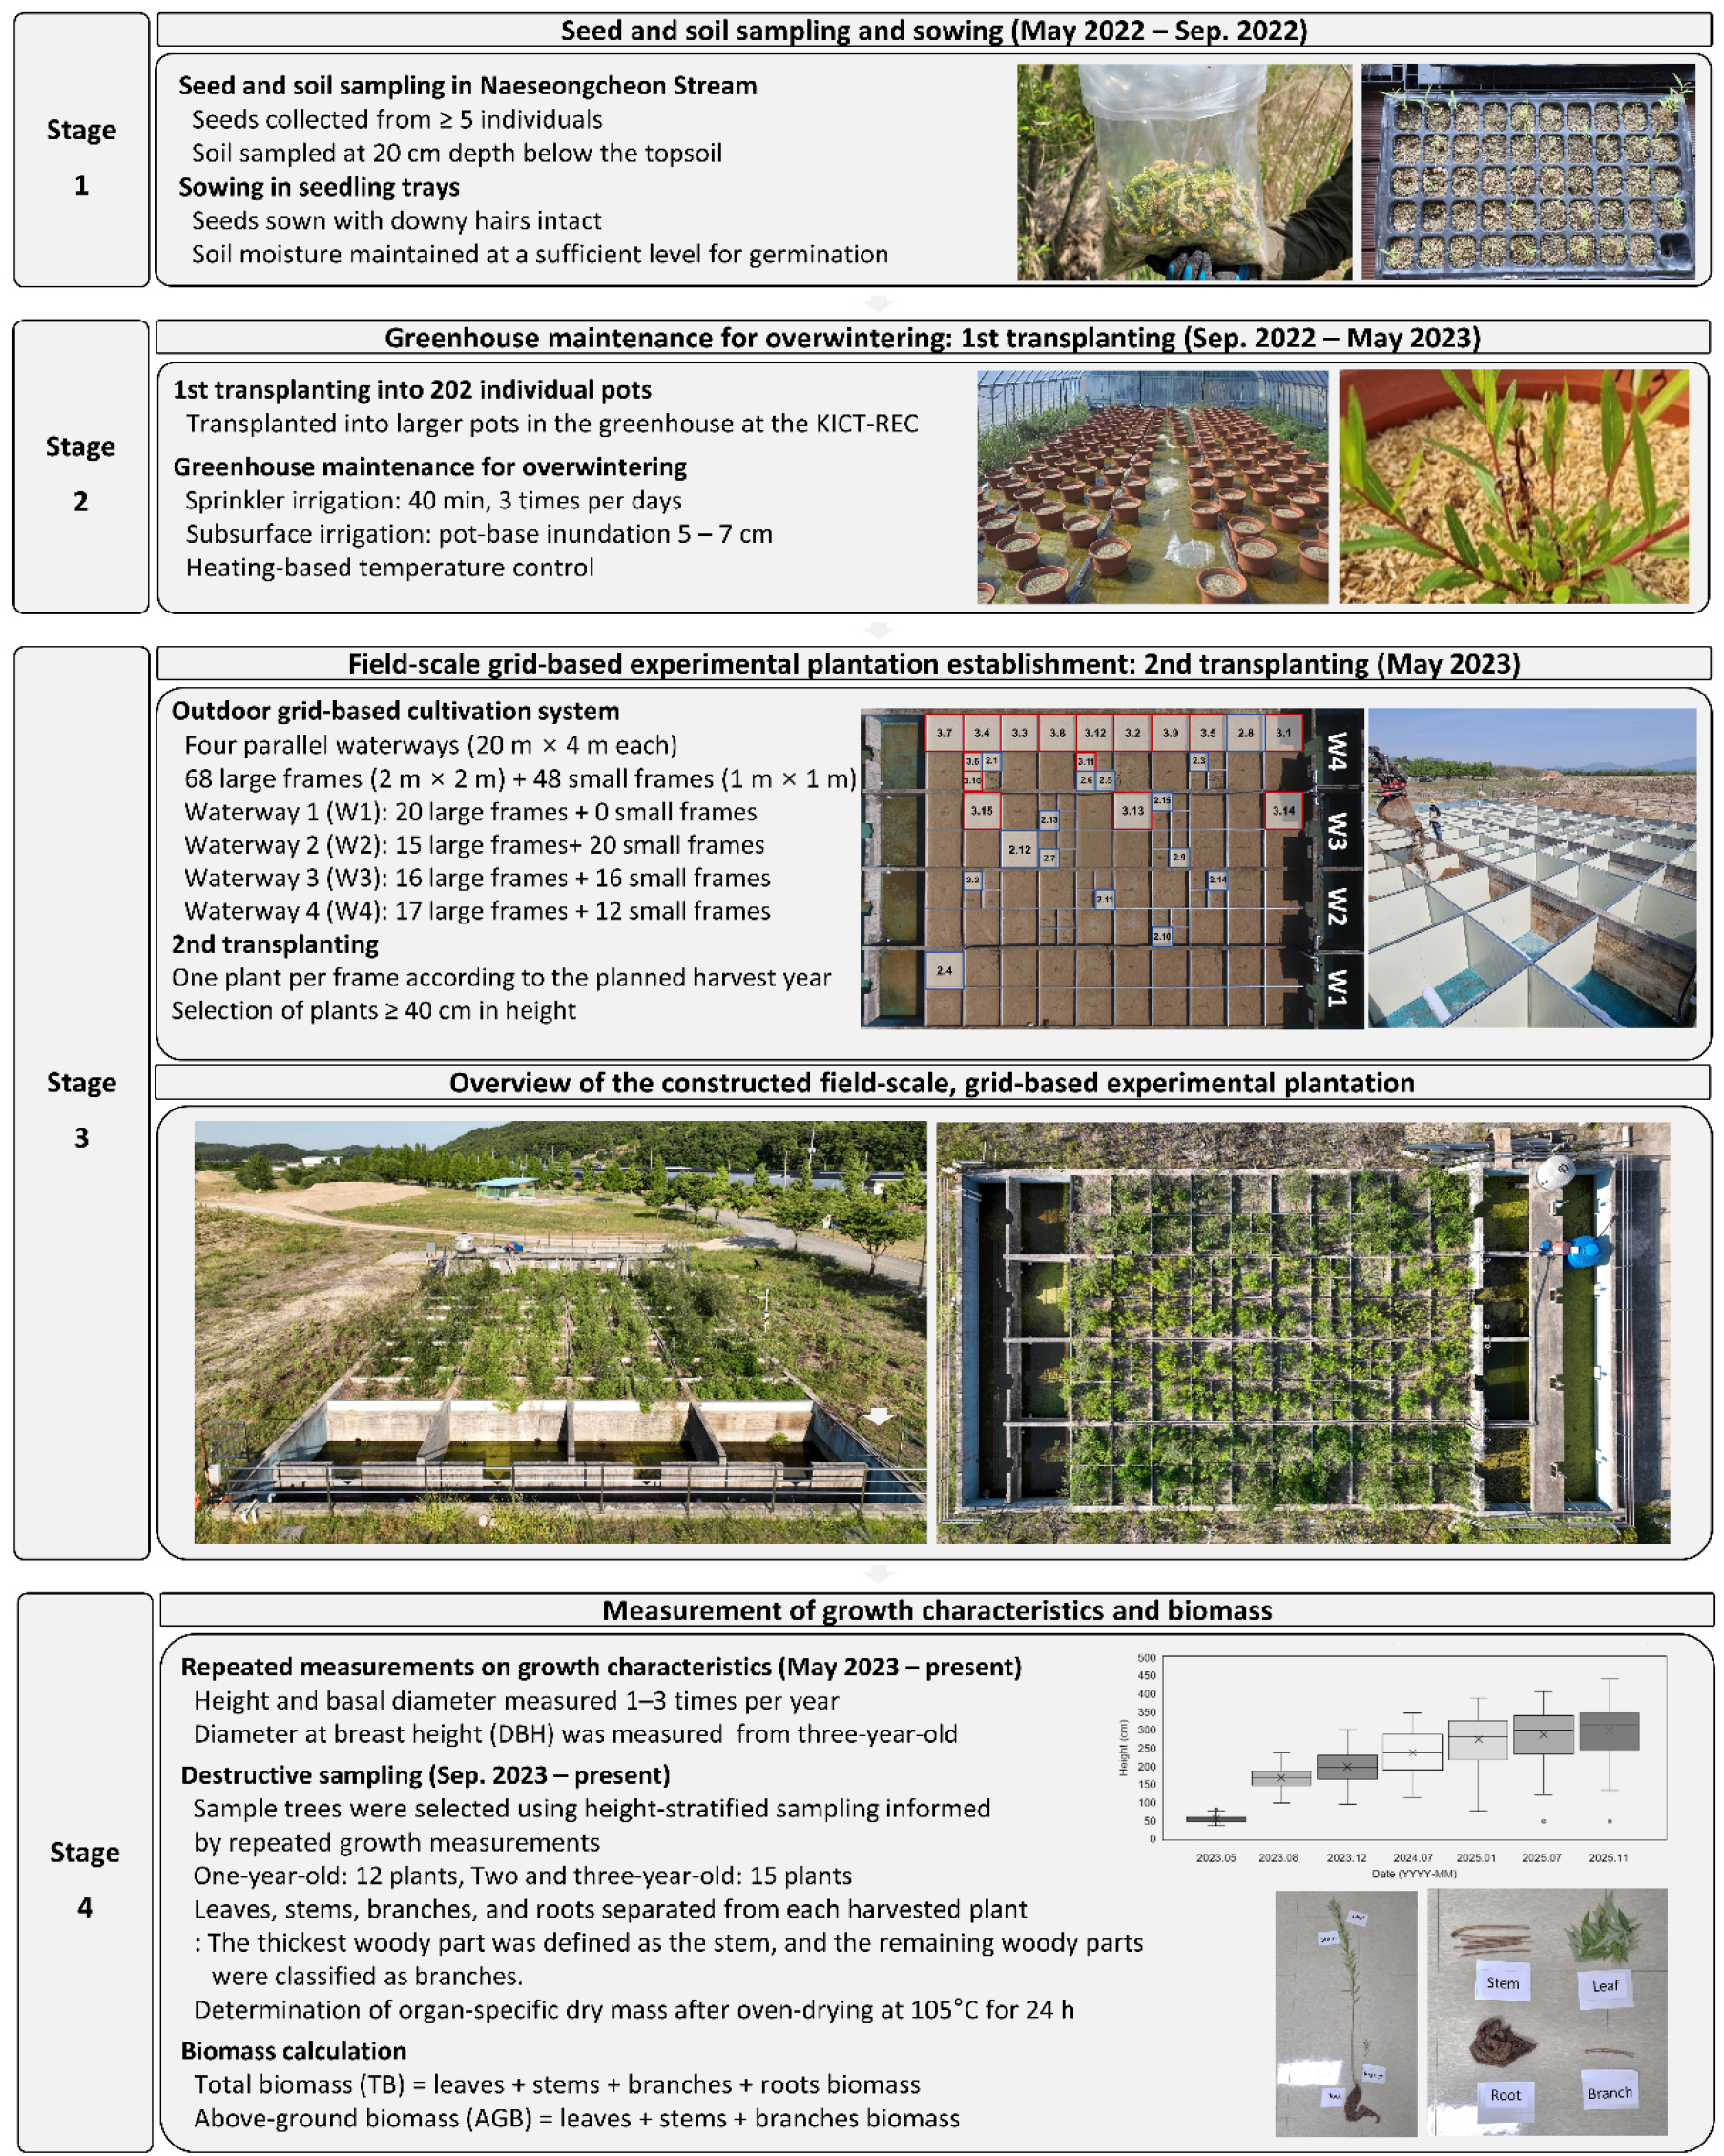
본 연구에서는 직접수확으로 취득한 생물량 자료를 기반으로 선버들의 수령별 이산화탄소 흡수량을 정량적으로 추정하고자 한국건설기술연구원 하천실험센터에 20 m × 16 m 규모의 격자형 야외 생육장을 조성하였다(Fig. 1). 국내 문헌에서는 선버들의 학명으로 Salix nipponica와 Salix subfragilis가 혼용되고 있으나(Jung 2019, Kim 2024), 본 연구에서는 Salix nipponica를 사용하였다. 생육장 조성에 사용한 종자와 토양은 2022년 5월 내성천에서 확보하였으며, 종자는 동일 개체군에 속하는 5그루 이상의 자생 선버들에서 채집하였다. 토양은 외부 종자의 유입 및 발아 가능성을 최소화하기 위하여 표토로부터 약 20 cm 깊이에서 수집하였다(Fig. 1, Stage 1). 채집한 종자는 수집한 토양을 담은 모판에 파종하였으며, 종자의 솜털이 수분에 의해 토양 표면에 부착될 수 있도록 하였다. 이후 모판의 수위를 토양 표면보다 높게 유지하여 얕은 수층이 형성되도록 하였고, 파종 2일 후부터 종자의 발아를 육안으로 확인하였다. 발아 후 생존한 유식물은 월동 및 초기 생육 관리를 위하여 2022년 9월 한국건설기술연구원 내 온실의 202개 화분으로 옮겨 심는 1차 이식을 수행하였다(Fig. 1, Stage 2). 온실 생육 기간에는 스프링클러를 이용해 매일 3회 관수하였으며, 화분 하단부 5–7 cm가 물에 잠긴 상태를 유지하는 지하관수를 병행하였다. 온실 생육 과정에서 202개의 화분 중 195개의 화분에서 선버들이 생존하였다. 이후 수령에 따른 직접수확이 가능한 야외 생육 환경을 구축하기 위하여 격자형 식재틀 116개(1 m × 1 m 규모 48개, 2 m × 2 m 규모 68개)로 구성된 선버들 생육장을 조성하였다(Fig. 1, Stage 3). 온실에서 생존한 선버들 중 수고 40 cm 이상인 116주를 선별하여 2023년 5월 야외 생육장 내 식재틀로 2차 이식하였다. 생육장 전체 식재면적 320 m2를 기준으로 한 초기 수목밀도는 약 3,625 trees ha-1였다.
2.2 이산화탄소 흡수량 산정
본 연구에서는 이산화탄소 흡수량 추정을 위하여 3년간의 모니터링을 통해 수령별 생장 특성을 기반으로 매년 표본목의 생물량을 측정하였다(Fig. 1, Stage 4). 매년 선버들 생육장에서 수고, 기저직경, 흉고직경 등의 생장 특성 자료를 측정하여 수령별 생장 특성 변화를 파악하였다. 이후 IPCC (2006) 지침에 기반한 직접수확법을 통해 부위별 건중량을 측정하고 이를 합산하여 개체별 생물량을 산정하였으며, 생산량과 이산화탄소 흡수량을 정량화하였다. 생산량은 잎을 제외한 각 부위별 건중량(dry weight, DW, kg DW) 합을 수령으로 나눈 뒤 잎 건중량을 더하여 산정한 수령 기반 연평균 생산량(age-based average annual production)과, 일정 기간 동안의 생물량 차이를 해당 기간으로 나누어 산정하는 증가량 기반 생산량(increment-based production)으로 정의하고 산정하였다. 이후 각 산정 기준에 따라 계산된 생산량에 탄소전환계수와 탄소–이산화탄소 질량비를 적용하여 수령 기반 연평균 이산화탄소 흡수량(age-based average annual carbon dioxide uptake)과 증가량 기반 이산화탄소 흡수량(increment-based carbon dioxide uptake)을 추정하였다.
2.2.1 생장 특성 조사 및 표본목 선정
선버들 생육장에서 수령에 따른 생장 특성을 조사하고 굴취 표본목 선정 시 생육장 내 생장 특성 분포를 반영하기 위하여 2023–2025년 동안 모니터링을 실시하였다. 전 개체를 대상으로 수고와 기저직경을 측정하였으며, 흉고직경(diameter at breast height, DBH)은 2025년 7월부터 선행연구와의 비교를 위하여 추가 측정하였다. 수령에 따른 개체별 잎 수, 지상부 면적의 수직 분포 및 생물량을 측정 및 산정하기 위하여 수령별 표본목을 선정하였다. 1년생은 초기 생육 단계 분석을 위하여 2차 이식 이후 온실에 재보관한 79주 중 16주를 선별하였다. 이 중 부위별 건중량 자료에서 음(−)의 값 등 물리적으로 성립하지 않는 값이 하나 이상 확인된 4주를 사전에 정의한 기준(어느 한 부위라도 음의 건중량이 기록된 개체는 전체 분석에서 제외)에 따라 배제하고 12주를 분석에 활용하였으며, 동일한 배제 기준을 모든 분석 항목에 일관되게 적용하였다. 다만 이때 1년생 표본목은 2차 이식 선발 기준(수고 40 cm 이상)에 미달하여 온실에 재보관된 개체군에서 선정된 것이고 화분 조건에서 생육하였으므로, 야외 생육장에서 생육한 2–3년생 표본목과 생육 환경 및 선발 조건이 동일하지 않다. 따라서 1년생 자료는 초기 생육 단계의 참고자료로 활용하였으며, 이로 인한 해석상의 한계는 결론에 함께 기술하였다. 이후 표본목은 매년 장마 이후 잎이 가장 무성한 시기에 선정하고 굴취하였다. 표본목 선정 시 생육장 내 전체 개체를 수고 분포에 따라 상·중·하의 3개 계층으로 구분하되, 계층별 개체수 차이가 최대 1개체가 되도록 하였다. 각 계층에서 5주씩 선정하여 수령별 15주를 선정하였다. 이때 계층별 개체수와 무관하게 동일 수를 배분하였으므로, 표본 평균은 계층 크기를 가중한 값이 아니라는 점에서 생육장 전체 평균과 차이가 있을 수 있다.
개체별 잎 수는 1년생에서는 전체 표본목을 대상으로, 이후에는 각 계층별로 1주씩 선정한 대표목을 대상으로 측정하였다. 지상부 면적의 수직 분포는 개체 수고를 기준으로 10개 구간으로 등분한 뒤 각 구간의 면적을 합산하여 산정하였다. 이때 Ji et al. (2023)과 Bae et al. (2024)에서 정의한 내용에 기반하여, 구간별 면적은 개체별 전체 잎 한쪽 면적(total one-sided leaf area of one plant, AL,t)과 전체 줄기 정면 투영 면적(total frontal- projected stem area of one plant, AS,t)으로 분류하여 계산하였다. AS,t는 줄기와 가지로 구성되며, 구간별 줄기 면적과 가지 면적을 각각 산정한 뒤 합산하여 추정하였다. 이때 가장 두꺼운 주간(main stem)만을 줄기로 정의하고 나머지를 가지로 분류하였다. 수령별 지상부 면적 산정을 위하여 1년생은 부위별 분류 이전에 표본목 중 하나의 개체를 촬영한 사진을 기반으로 이미지 분석을 수행하여 구간별 잎 한쪽 면적과 가지 면적을 추정하였고, 줄기 면적은 사진에서 추정한 구간별 중앙 직경에 구간 길이를 곱하여 계산하였다. 2–3년생은 굴취한 표본목 15주 중 선정한 대표목 3주를 잎과 가지를 구간별로 분리한 후 겹침을 최소화하도록 평면에 배치하여 촬영한 이미지에서 면적을 추정하였으며, 줄기 면적은 구간별 중앙 직경을 직접 측정한 뒤 구간 길이를 곱하여 산출하였다.
2.2.2 생산량 및 이산화탄소 흡수량 산정
생산량 산정을 위하여 수령별 표본목을 굴취한 후 잎, 줄기, 가지 및 뿌리로 구분하였다. 각 부위는 1년생의 경우 105ºC, 2년생부터는 65ºC에서 항량(恒量, constant weight)에 도달할 때까지 건조한 뒤 건중량을 측정하였다. 잎, 줄기 및 가지의 건중량을 합산하여 지상부 생물량을 구하였고 지상부 생물량에 뿌리 건중량을 더하여 총 생물량을 계산하였다. 산정된 생물량을 기반으로 수령 기반 연평균 생산량 및 증가량 기반 생산량을 구분하여 산정하였다. 이때 생물량 및 생산량을 단위면적당 값으로 환산하기 위해서는 수목밀도가 필요하나, 선버들 생육장의 수목밀도는 실험 배치 조건을 반영한 값이기에 개체가 독립적으로 생육된 생육장 조건상 자연 군락의 수목밀도 구조를 직접 반영하기에는 한계가 있다. 따라서 Kim (2024)에서 제시한 2012년, 2022년 및 2023년의 방형구 조사 기반 수목밀도(tree density, trees ha-1) 자료를 활용하였으며, 각 연도의 수목밀도는 조사 방형구 수를 가중치로 하여 가중평균한 값을 대표 수목밀도로 동일하게 적용하였다. 수령 기반 연평균 생산량은 개체별로 산정한 연평균 생산량에 대표 수목밀도를 적용하여 단위면적당 생산량으로 환산한 후, 이를 평균하여 추정하였다. 증가량 기반 생산량은 수령별 평균 단위면적당 생물량의 현년도와 전년도 차이로 산정하였다. 이때 Kim (2024)은 남강댐 저수지의 선버들 군락(원 논문에서는 Salix subfragilis로 표기)을 대상으로 한 연구로 본 연구 대상지와 조사 지점이 다르며, 본 생육장의 초기 수목밀도는 약 3,625 trees ha-1이다. 따라서 본 연구의 단위면적당 값은 자연 군락의 수목밀도를 가정한 환산값이며, 실측 수목밀도를 적용한 경우와의 차이는 3.2절에 민감도 분석으로 제시하였다. 한편 본 연구의 생산량은 현존 생물량으로부터 산정한 값으로, 낙엽 및 낙지, 뿌리 회전 및 고사에 의한 손실을 포함하지 않으므로 순1차생산량(net primary production)과는 구분되며 생물량 축적 기반의 추정치에 해당한다. 또한 수령 기반 연평균 생산량은 잎이 매년 전량 새로 생산된다고 가정하여 잎 건중량을 더하는 반면, 증가량 기반 생산량은 연도 간 생물량 차이를 이용하므로 두 산정 방식은 잎의 취급 방식이 서로 다르다. 두 값을 비교할 때에는 이러한 정의상의 차이를 함께 고려하여야 한다.
추정된 각 생산량에 IPCC (2006) 온대와 아한대에서의 활엽수 평균 탄소전환계수(carbon fraction, CF) 0.48과 탄소–이산화탄소 질량비(44/12)를 적용하여 수령 기반 연평균 이산화탄소 흡수량 및 증가량 기반 이산화탄소 흡수량을 각각 계산하였다. 또한 산정 결과의 불확실성을 평가하기 위하여 탄소전환계수를 0.45–0.51 범위에서, 수목밀도를 생육장 실측 밀도와 Kim (2024)의 대표 수목밀도(4,673 trees ha-1) 사이에서 각각 변화시키는 민감도 분석을 수행하였다.
2.2.3 상대생장식 유도
직접수확 없이 기저직경(basal diameter, BD)만으로 부위별 및 총 생물량을 추정할 수 있는 종 고유 상대생장식을 도출하였다. 굴취 표본목 42주(1년생 12주, 2년생 15주, 3년생 15주)의 개체별 기저직경 및 부위별 건중량을 이용하여 로그–로그 형태의 회귀식 ln(W) = a + b ln(BD)를 적합하였으며, 여기서 W는 부위 또는 전체 건중량(g), BD는 기저직경(cm)이다. 로그 역변환 시 발생하는 편의는 평균제곱오차(mean squared error, MSE)를 이용한 Baskerville 보정계수 exp(MSE/2)를 적용하여 보정하였다. 각 방정식에 대하여 계수 a와 상대생장 지수 b (95% 신뢰구간), 결정계수 R2, 보정계수 및 표본 수를 제시하였다. 총 생물량 방정식의 예측 성능은 leave-one-out 교차검증을 통해 산출한 평균절대백분율오차(mean absolute percentage error, MAPE)로 평가하였으며, 기저직경 외에 수령을 범주형 변수로 추가할 때의 설명력 개선 여부도 검토하였다.
2.2.4 선행연구 자료의 수집 및 지상부 이산화탄소 흡수량 기준 종합
선버들 생육장에서 확보한 1–3년생 수령 자료의 한계를 보완하고 수령 증가에 따른 버드나무속 식생의 이산화탄소 흡수량 변화 경향을 검토하기 위하여, 현장조사 기반 선행연구 자료를 수집하여 본 연구 자료와 함께 비교 분석하였다. 선행연구 자료는 현장조사를 통해 생물량, 생산량 또는 이산화탄소 흡수량을 제시한 선버들 연구를 대상으로 선정하였으며, 연구 간 비교를 위해 지상부 이산화탄소 흡수량 기준으로 정리하였다. 수령정보와 함께 부위별 단위면적당 생물량이 제시된 경우에는 이를 활용하여 생산량과 이산화탄소 흡수량을 추정하였고, 생산량 자료가 직접 제시된 경우에는 해당 값을 이용하여 이산화탄소 흡수량을 산출하였으며, 이산화탄소 흡수량이 직접 제시된 경우에는 보고된 값을 그대로 활용하였다. 탄소전환계수를 별도로 제시하지 않은 선행연구는 본 연구에서 적용한 CF 값(0.48)을 이용하여 동일 기준으로 환산하였다. 개별 연구의 자료 형태에 따른 추가 처리도 수행하였는데, Cho (2012)의 경우 수고 자료가 직접 제시되지 않아 각 수령별로 제공된 비선형 로지스틱 회귀식을 이용하여 수고를 추정하였다. Kim (2006)의 경우 방형구 수목밀도, 표본목의 수령 및 부위별 생물량, 군락 단위의 수령 기반 연평균 생산량을 제시하였다. 그러나 해당 생산량은 혼합 수령 군락 전체를 대상으로 산정된 값이며, 군락의 평균 수령이 제시되어 있지 않아 수령별 이산화탄소 흡수량 비교에 직접 활용하기에는 한계가 있다. 따라서 군락 단위 생산량 대신 표본목별 수령 및 부위별 생물량 자료를 활용하였다. 이때 해당 연구에서 별도로 제시한 꽃 생물량 또한 반영하였다. 이후 방형구 수목밀도가 각 수령의 개체들로만 구성된 군락에도 동일하게 적용된다고 가정하여, 본 연구와 동일한 수령 기반 연평균 생산량 및 이산화탄소 흡수량 산정 절차에 따라 수령별 생산량 및 이산화탄소 흡수량을 재산정하였다. 다만 이 가정은 혼합 수령 군락의 실제 밀도 구조를 단순화한 것으로, 자기솎음에 따른 수령별 밀도 변화를 반영하지 못한다. 따라서 재산정된 Kim (2006)의 수령별 값은 절대값이 아니라 상대적 경향 비교에 한정하여 활용하였다.
3. 결과 및 고찰
3.1 수령별 생장 특성과 생물량 배분
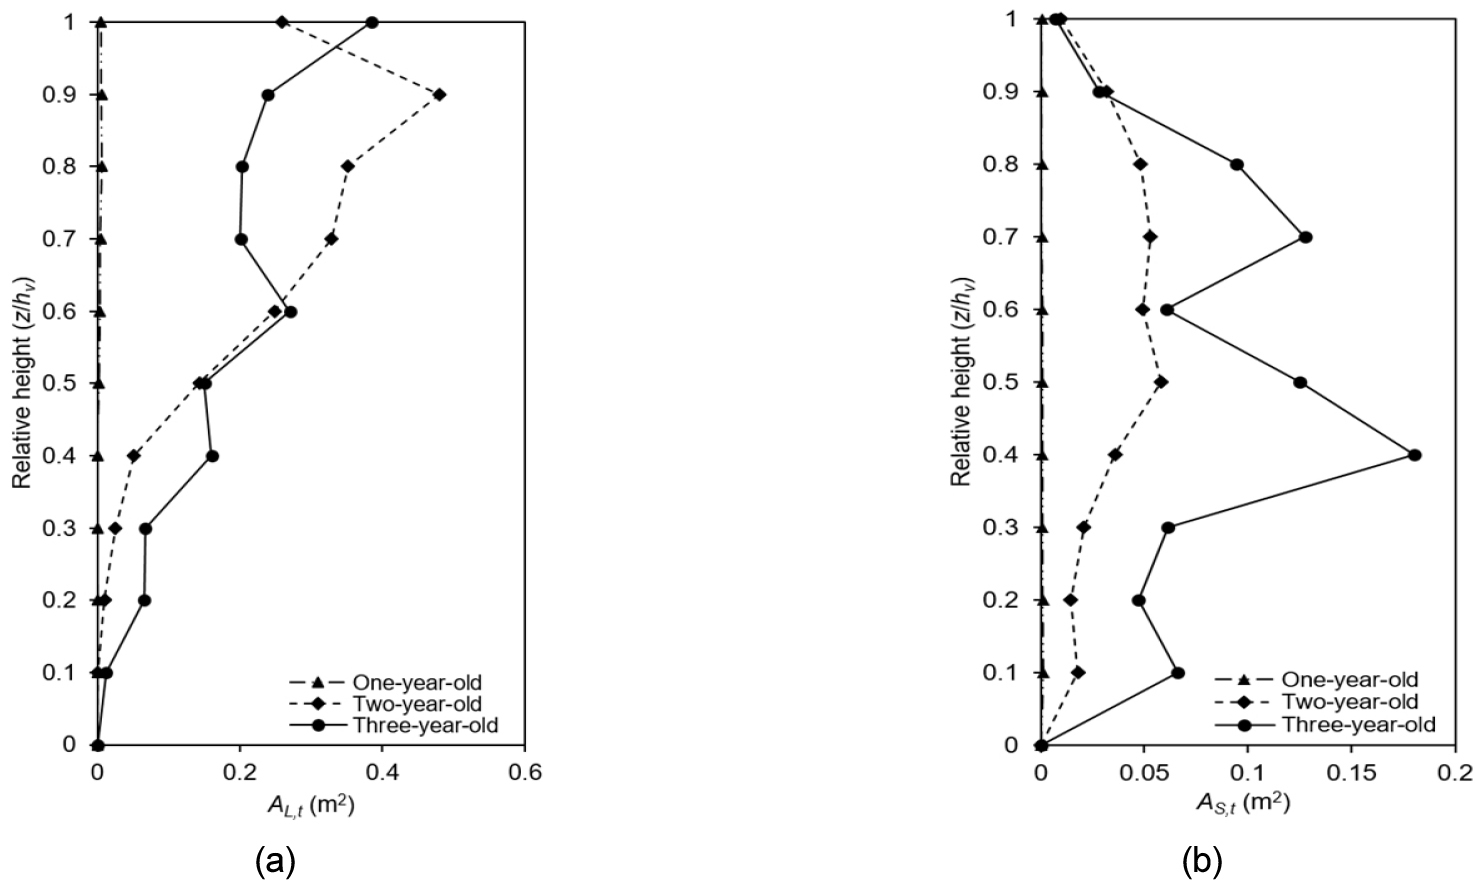
선정된 굴취 표본목 중 2년생은 2 m × 2 m 및 1 m × 1 m 식재틀에 각각 3개체와 12개체가 분포하였으며, 3년생은 각각 12개체와 3개체가 분포하였다(Fig. 2). 모니터링 기간에는 표본목 굴취를 제외한 개체수 감소가 발생하지 않았다. 생육장 전체 식재면적 320 m2와 조사 시점별 잔존 개체수를 기준으로 산정한 수목밀도는 2년생과 3년생이 각각 3,625 및 3,156 trees ha-1였으며, 3년생 수목밀도에는 2년생 표본목 굴취에 따른 개체수 감소가 반영되었다. 생장 특성 측정 결과, 수령 증가에 따라 수고가 증가하였으나 구간별 생장 정도에는 차이가 있었다(Fig. 3 (a)). 1–2년생 구간에서는 평균 수고와 평균 기저직경이 각각 1.6 m에서 2.7 m, 1.2 cm에서 2.8 cm로 증가하였다. 2–3년생 구간에서는 수고가 2.7 m에서 2.9 m로 1–2년생 구간에 비하여 소폭 증가한 반면, 기저직경은 2.8 cm에서 6.3 cm로 크게 증가하였으며 흉고직경은 3년생에서 2.2 cm로 측정되었다. 평균 잎의 개수는 1년생 105개, 2년생 4,875개, 3년생 6,373개로 나타났다. 생육장 내 전 개체를 대상으로 한 반복 측정에서도 평균 수고와 기저직경은 관측 기간 동안 지속적으로 증가하였다(Fig. 3 (b)). 이는 초기 생장 단계의 선버들이 수령에 따라 단순한 수고 생장뿐 아니라 직경 증가를 동반하며 생장한다는 것을 보여준다. 지상부 총 면적(AL,t + AS,t)은 1년생 0.03 m2, 2년생 2.24 m2, 3년생 2.55 m2로 증가하였고, 잎 한쪽 면적과 줄기 정면 투영 면적의 수직 분포 양상은 수령에 따라 상이하게 나타났다(Fig. 4). 다만 지상부 면적 자료는 1년생 1개체, 2–3년생 각 3개체의 대표목에 기반하므로 개체 변이를 반영하지 못하며, 수령 간 수직 분포의 차이는 경향 수준으로 해석하여야 한다.
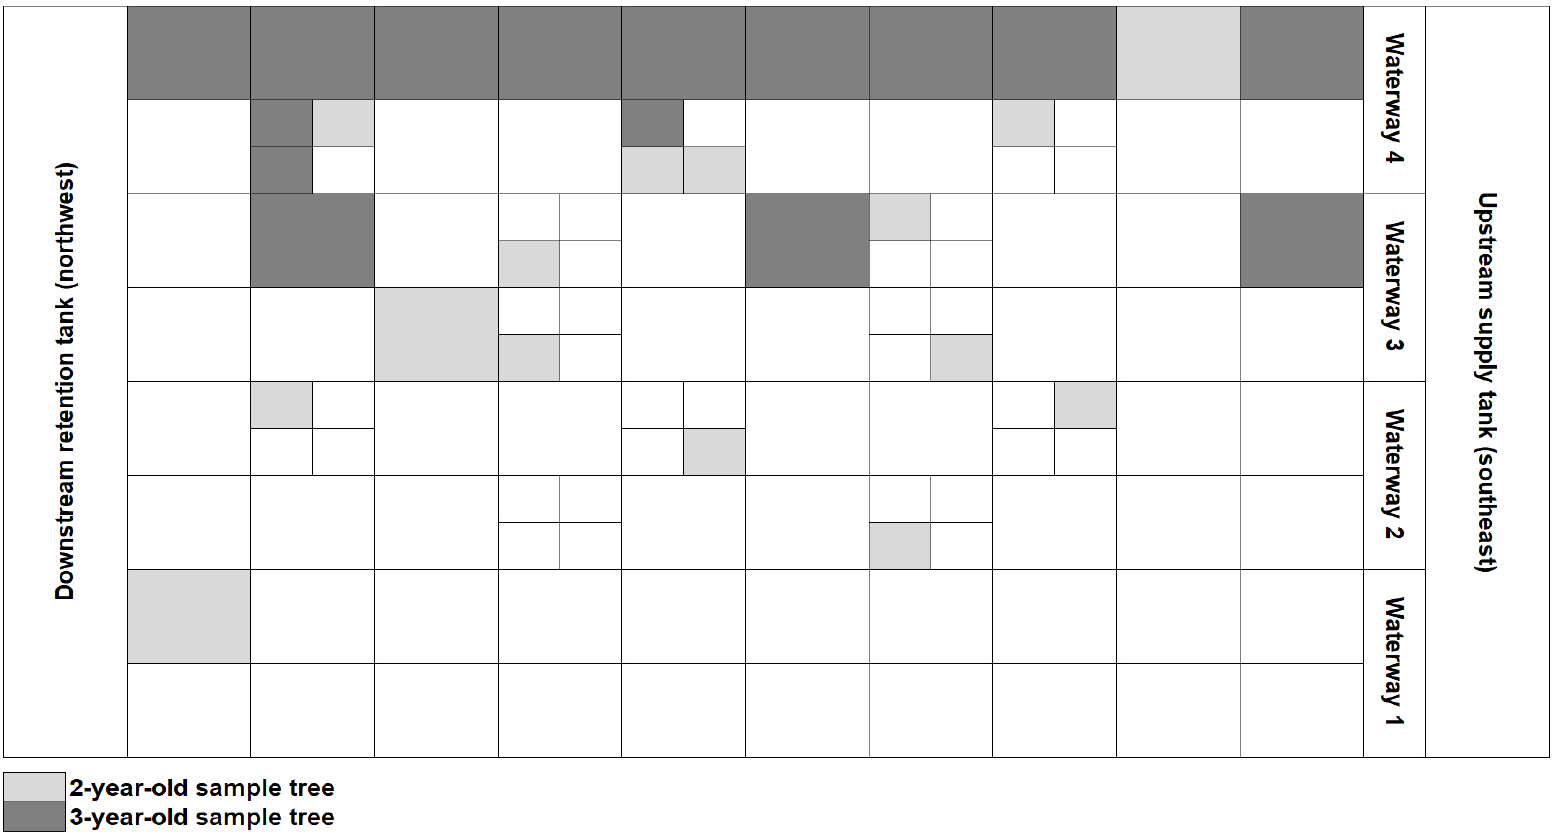
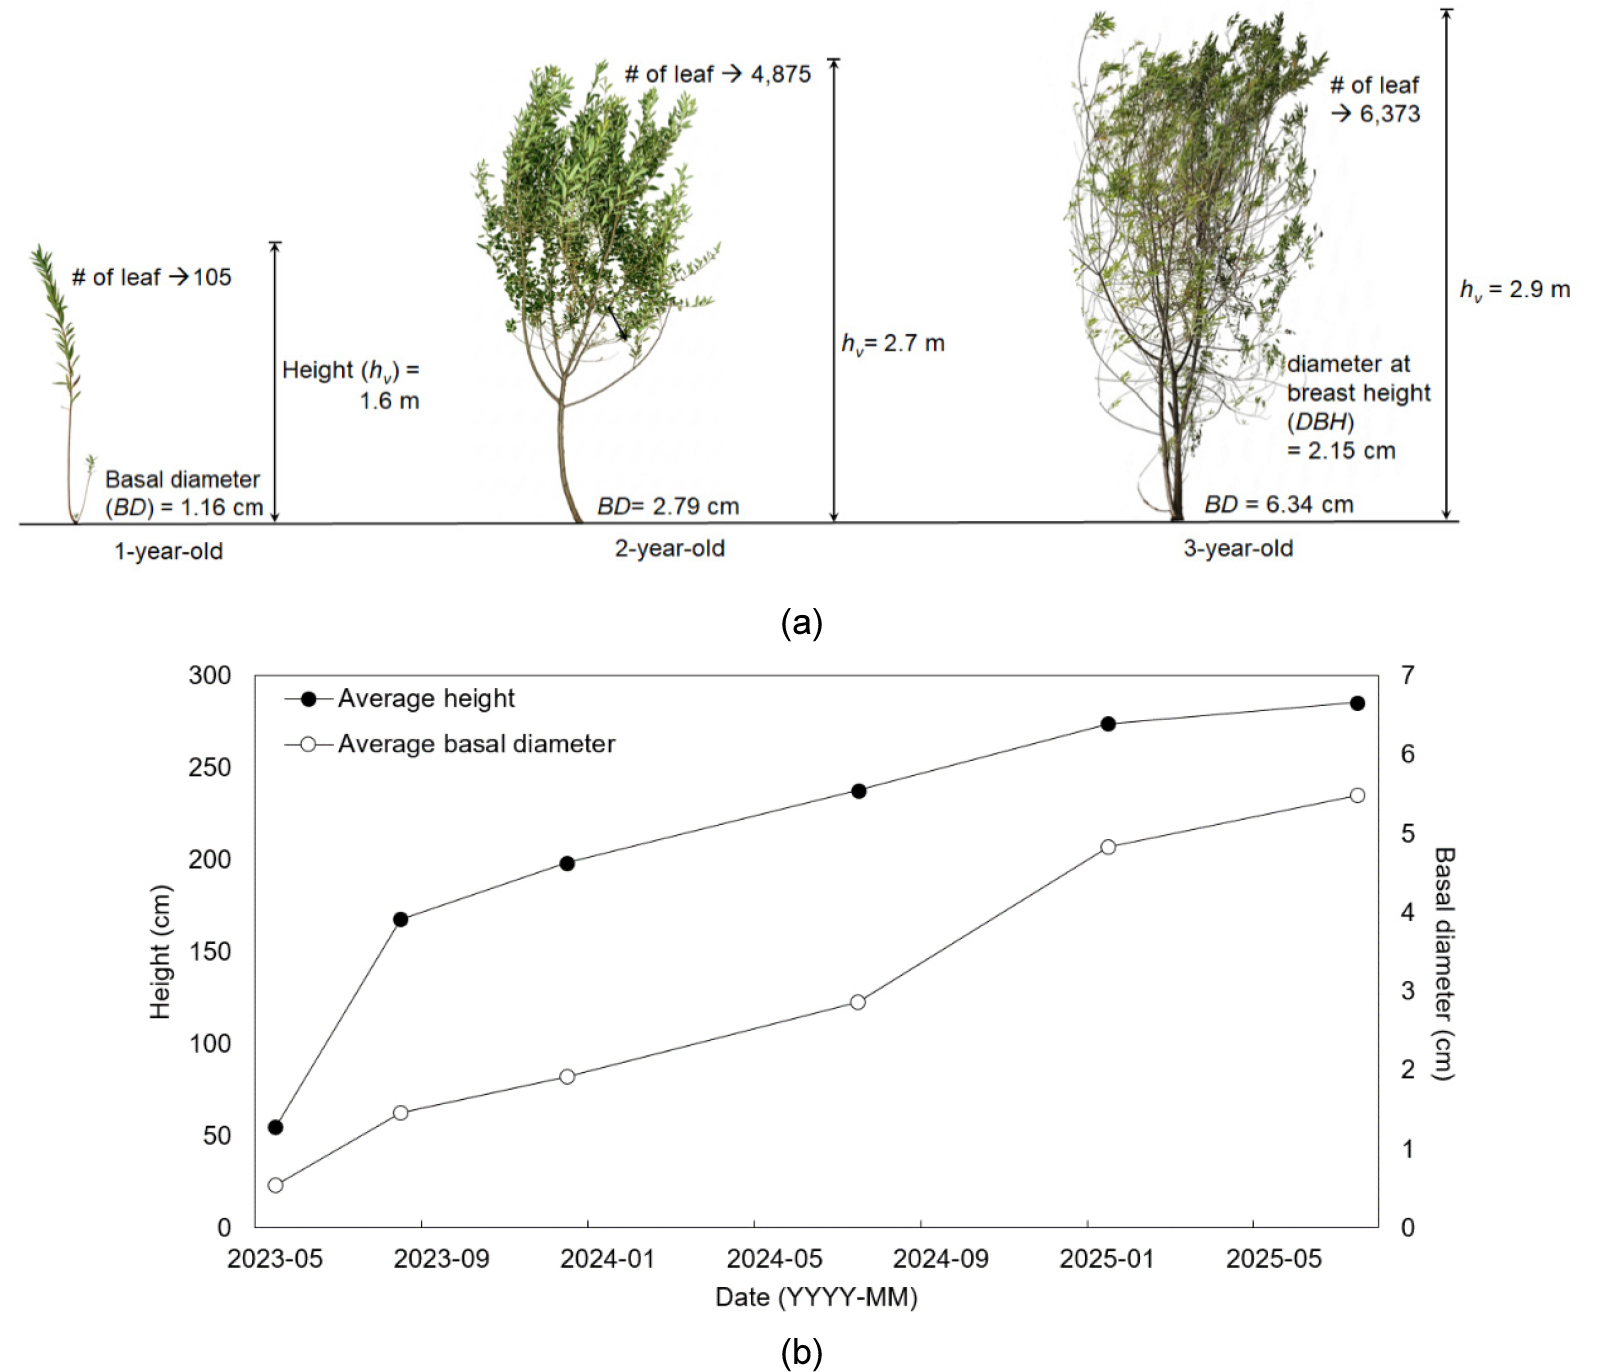
Fig. 3.
Growth characteristics of Salix nipponica in the grid-based outdoor experimental plantation site: (a) age-specific average values of height (hv), basal diameter (BD), diameter at breast height (DBH), leaf number, and sampled tree number (b) temporal variation in average height and basal diameter.
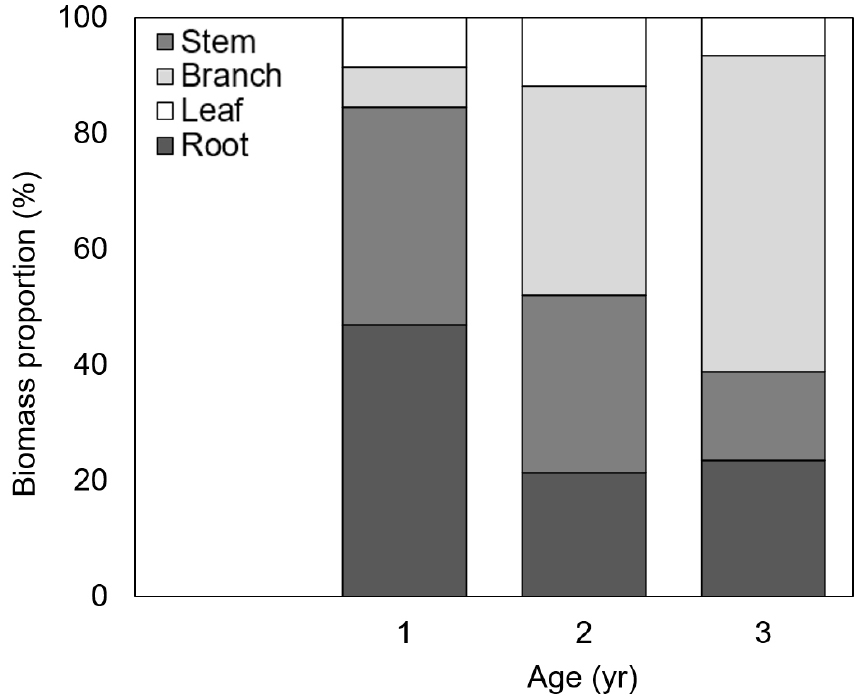
수령별 굴취 표본목을 대상으로 산정한 개체별 평균 총 생물량은 1년생 36.9 g, 2년생 846.9 g, 3년생 2,526.4 g으로 수령 증가에 따라 뚜렷하게 증가하였으며, 단위면적당 총 생물량은 1년생 0.17, 2년생 3.96, 3년생 11.81 ton ha-1로 산정되었다. 총 생물량을 지상부 및 지하부 생물량으로 구분한 결과, 지하부 생물량 비율은 1년생에서 약 47%로 가장 높았으나 2년생과 3년생에서는 각각 21%와 23%로 감소하였다(Table 1, Fig. 5). 반면 가지 생물량의 비율은 2년생 36%, 3년생 55%로 크게 증가하여, 수령 증가에 따른 총 생물량 증가는 주로 가지 생물량의 증가를 중심으로 나타났다. 이러한 생물량 배분의 변화는 개체별 지하부-지상부 비(root- shoot ratio)를 수령별로 평균한 결과에서도 확인되는데, 1년생에서 0.96으로 가장 높았다가 2년생 0.31, 3년생 0.33으로 감소하였다. 이 값은 개체별로 산출한 비의 평균(mean of individual ratios)이며, 수령별 평균 생물량의 비(ratio of means)로 계산할 경우 각각 0.89, 0.27, 0.31로 다소 낮게 산정된다. 초기 단계의 높은 뿌리 배분은 개척식물이 정착 초기에 뿌리를 통한 정착과 자원 확보에 투자하는 최적분배(optimal partitioning) 양상과 부합하며(Poorter et al. 2012), 이후 가지 우세로의 전환은 잎과 가지를 통한 공간 점유 및 빛 획득 기능이 강화되는 생장 단계로 전환되었음을 보여준다. 이와 같이 지하부를 포함한 총 생물량을 부위별로 산정함으로써, 기존 지상부 중심 자료에 비해 초기 생장 단계 선버들의 생물량 분포 특성을 보다 포괄적으로 검토할 수 있었다.
Table 1.
Biomass components and ratio of Salix nipponica sample trees by age in the grid-based experimental plantation
| Age (yr) | Stem (g) | Branch (g) | Leaf (g) | Root (g) |
| 1 |
13.9 (38%) |
2.6 (7%) |
3.1 (8%) |
17.3 (47%) |
| 2 |
259.8 (31%) |
307.0 (36%) |
99.3 (12%) |
180.8 (21%) |
| 3 |
387.7 (15%) |
1383.2 (55%) |
163.3 (6%) |
592.3 (23%) |
3.2 수령 및 증가량 기반 이산화탄소 흡수량
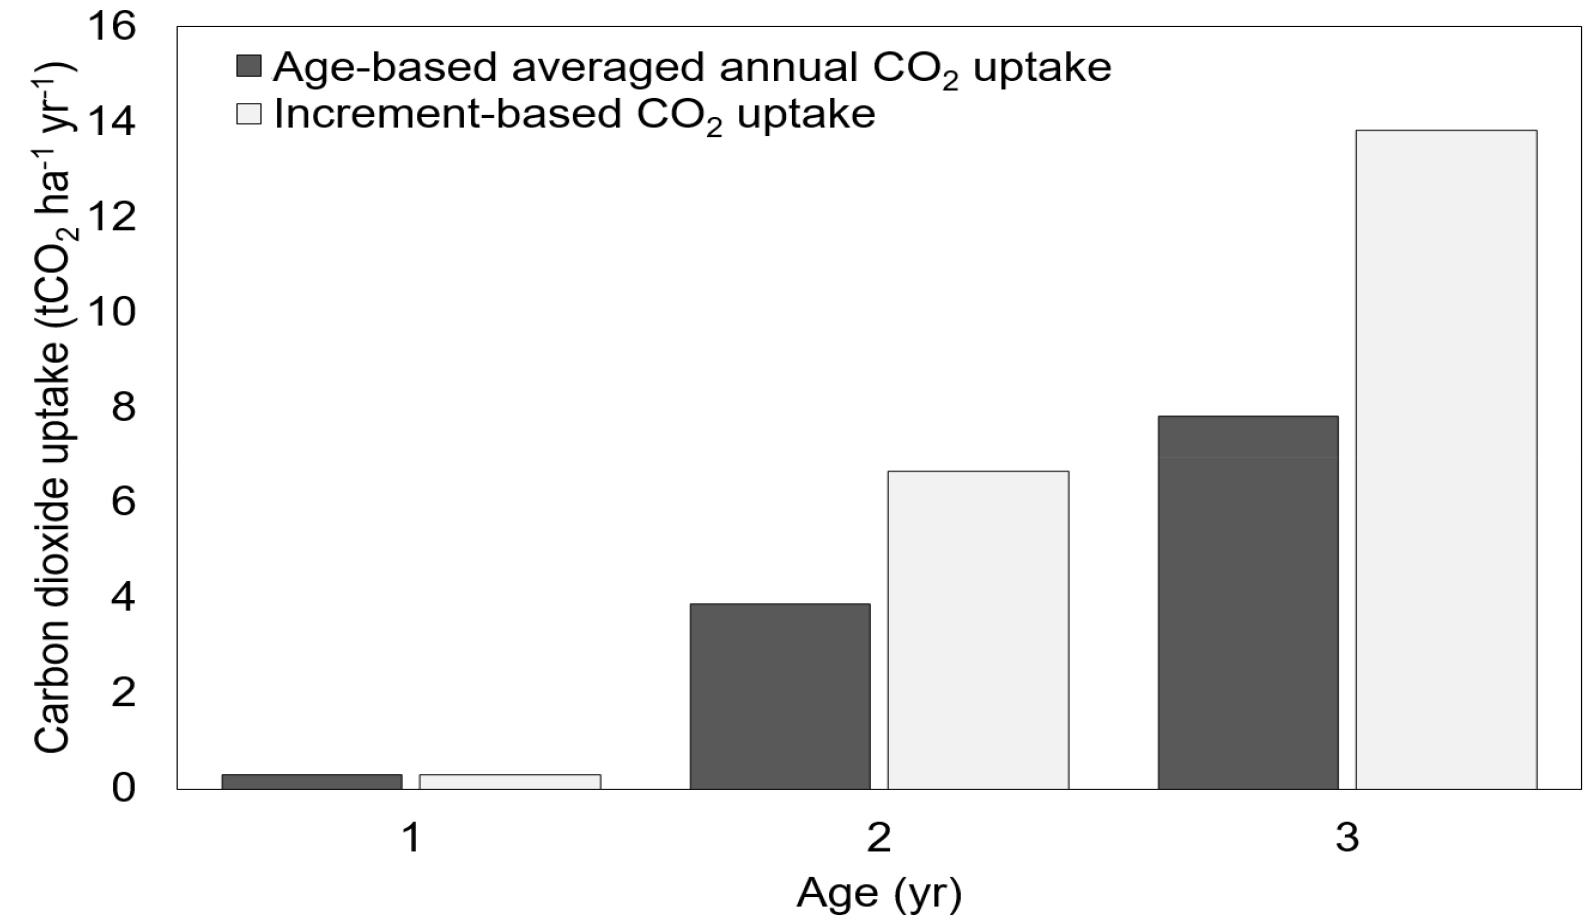
선버들 생육장에서 취득한 수령별 생물량 자료를 활용하여 수령 기반 연평균 생산량과 증가량 기반 생산량을 산정하고, 각각으로부터 수령 기반 연평균 이산화탄소 흡수량과 증가량 기반 이산화탄소 흡수량을 산출하였다(Table 2). 수령 기반 연평균 총 이산화탄소 흡수량은 1년생 0.3 tCO₂ ha-1 yr-1, 2년생 3.89 tCO₂ ha-1 yr-1, 3년생 7.82 tCO₂ ha-1 yr-1로 산정되었으며, 두 산정 방식 모두 수령 증가에 따라 함께 증가하였다.
Table 2.
Age-specific production and CO2 uptake of Salix nipponica in above-ground biomass (AGB) and total biomass (TB) under age-based averaged and increment-based estimators
동일 수령에서 두 산정 방식은 서로 다른 값을 제시하였다. 증가량 기반 총 이산화탄소 흡수량은 1년생 0.3 tCO₂ ha-1 yr-1, 2년생 6.66 tCO₂ ha-1 yr-1, 3년생 13.81 tCO₂ ha-1 yr-1로, 1년생에서는 수령 기반 연평균값과 동일하였으나 2년생과 3년생에서는 각각 약 1.7배, 1.8배 높게 나타났으며 이 격차는 수령 증가에 따라 확대되었다(Fig. 6). 이는 생물량 증가가 수령별로 균등하게 이루어지지 않을 경우, 특정 수령 구간의 실제 흡수량이 식재 이후 해당 수령까지의 평균 흡수량보다 크게 나타날 수 있음을 의미한다. 이러한 산정 방식에 따른 차이는 초기 생장이 급격한 개척식물에서 일반적으로 나타날 수 있는 특성으로, 선버들의 이산화탄소 흡수량을 평가 비교할 때에는 산정 기준을 명시하고 두 값을 함께 고려할 필요가 있다. 다만 본 연구의 표본 수가 수령별 12–15주로 제한적이고 개체 간 생물량 변이가 크므로, 두 산정 방식 간 차이의 통계적 유의성을 단정하기는 어렵다. 따라서 위에서 제시한 배수는 정밀한 추정치가 아니라 산정 방식에 따른 차이의 방향과 크기를 나타내는 지표로 해석하여야 한다.
탄소전환계수에 대한 민감도를 검토한 결과, CF를 0.45–0.51 범위에서 변화시킬 때 3년생 수령 기반 연평균 총 이산화탄소 흡수량은 7.33 - 8.31 tCO₂ ha-1 yr-1로, CF = 0.48 기준값(7.82) 대비 약 ±6.2% 범위에서 변동하였다. 이는 선버들 고유값이 아닌 IPCC (2006) 기본값을 적용함에 따른 불확실성의 크기를 나타내며, 종 고유 탄소전환계수의 확보가 향후 흡수량 추정의 정밀도를 높일 수 있음을 시사한다.
한편, 수목밀도에 대한 민감도를 검토한 결과, 생육장의 조사 시기별 수목 밀도를 적용한 2년생의 수령 기반 연평균 총 CO₂ 흡수량은 3.02 tCO₂ ha-1 yr-1로 기준값인 3.89 tCO₂ ha-1 yr-1보다 약 22% 감소하였다. 3년생은 5.28 tCO₂ ha-1 yr-1로 기준값인 7.82 tCO₂ ha-1 yr-1보다 약 33% 낮았다. 다만 본 연구에서 나타난 밀도 감소는 표본목 굴취로 발생한 인위적인 변화로, 개체의 유입과 고사, 자기솎음 및 교란 등에 의해 나타나는 자연 군락의 밀도 변화와는 발생 기작이 다르다. 실제로 모니터링 기간 동안 표본목 굴취를 제외한 고사나 개체수 감소가 관찰되지 않았다. 따라서 굴취가 없었다면 3년생 조사 시점에도 2년생과 유사한 3,625 trees ha-1 수준의 밀도가 유지되었을 가능성이 있으며, 이 밀도를 적용한 3년생의 CO₂ 흡수량은 6.07 tCO₂ ha-1 yr-1로 추정되어 기준값보다 약 22% 낮았다. 이는 CF에 따른 변동폭(±6.2%)보다 큰 불확실성 요인으로, 단위면적당 흡수량이 적용 수목밀도에 크게 의존함을 보여준다. 따라서 본 연구의 ha 단위 값은 특정 밀도 가정 하의 환산값으로 이해되어야 한다.
3.3 상대생장식
굴취 표본목 42주를 대상으로 도출한 부위별 전체 생물량의 상대생장식은 Table 3에 정리하였으며, 기저직경과 각 생물량 간 로그–로그 관계는 Fig. 7에 제시하였다. 기저직경 단일 변수로 총 생물량 변동의 87.2%(R2 = 0.872) (Fig. 7 (a)), 지상부 생물량 변동의 86.1%(R2 = 0.861) (Fig. 7 (b))를 설명하였으며, 지하부(뿌리) 생물량 또한 동등하게 높은 R2을 보였다(R2 = 0.872) (Fig. 7 (f)). 줄기(R2 = 0.838)도 강한 관계(Fig. 7 (c))를 나타낸 반면, 잎(R2 = 0.729)과 가지(R2 = 0.790)는 상대적으로 낮았는데(Figs. 7 (e) and 7 (d)), 이는 초기 생장 단계에서 광 환경과 분지 양상에 따른 개체 변이가 크기 때문으로 해석된다. 기저직경에 수령을 범주형 변수로 추가할 경우 총 생물량의 R2은 0.872에서 0.905로 상승하였으나, 수령을 연속형 변수로 투입할 경우에는 0.873으로 개선이 거의 없었다. 이는 기저직경이 수령에 따른 크기 변화를 이미 대부분 반영하고 있음을 의미하며, 기저직경 단일 변수만으로도 비파괴적 생물량 추정이 가능함을 보여준다. 다만 기저직경과 수령이 서로 강하게 교락되어 있으므로 두 변수의 기여를 분리하여 해석하기는 어려우며, leave-one-out 교차검증 결과 총 생물량의 평균절대백분율오차(MAPE)는 87.5%(중앙값 56.2%)로 개체 단위 예측오차가 크게 나타났다. 수령별로는 2년생에서 55.7%로 가장 낮았고, 개체 크기가 작아 상대오차가 확대되는 1년생에서 98.2%, 개체 간 변이가 큰 3년생에서 110.7%였다. 이는 로그 공간의 결정계수가 높더라도 역변환된 개체 생물량 예측에는 상당한 불확실성이 존재함을 의미하며, 본 상대생장식은 개체별 정밀 추정보다 다수 개체의 평균 생물량 추정에 적합함을 시사한다. 또한 표본의 기저직경 평균이 수령별로 세 구간(1년생 1.2 cm, 2년생 2.8 cm, 3년생 6.3 cm)에 집중되어 있어 결정계수의 상당 부분이 수령 간 차이에서 기인하는 점도 함께 고려하여야 한다.
Table 3.
Species-specific allometric equations for Salix nipponica: ln(W [g]) = a + b ln(BD [cm]), with Baskerville correction factor
* W: organ or whole-plant dry weight (g); BD: basal diameter (cm); n = 42 (12 one-, 15 two-, and 15 three-year-old trees). Values in parentheses for b are the half-width of the 95% confidence interval; all slopes are significant at p < 0.001. Back-transformation uses the Baskerville (1972) correction factor exp(MSE/2). Calibration range: BD 0.89–11.18 cm. Including age as a categorical covariate raised total-biomass R2 from 0.872 to 0.905 (0.873 when age is entered as a continuous variable). Leave-one-out cross-validation for total biomass gave MAPE = 87.5% (median 56.2%), indicating that the equations are suited to stand-level mean estimation rather than individual-level prediction.
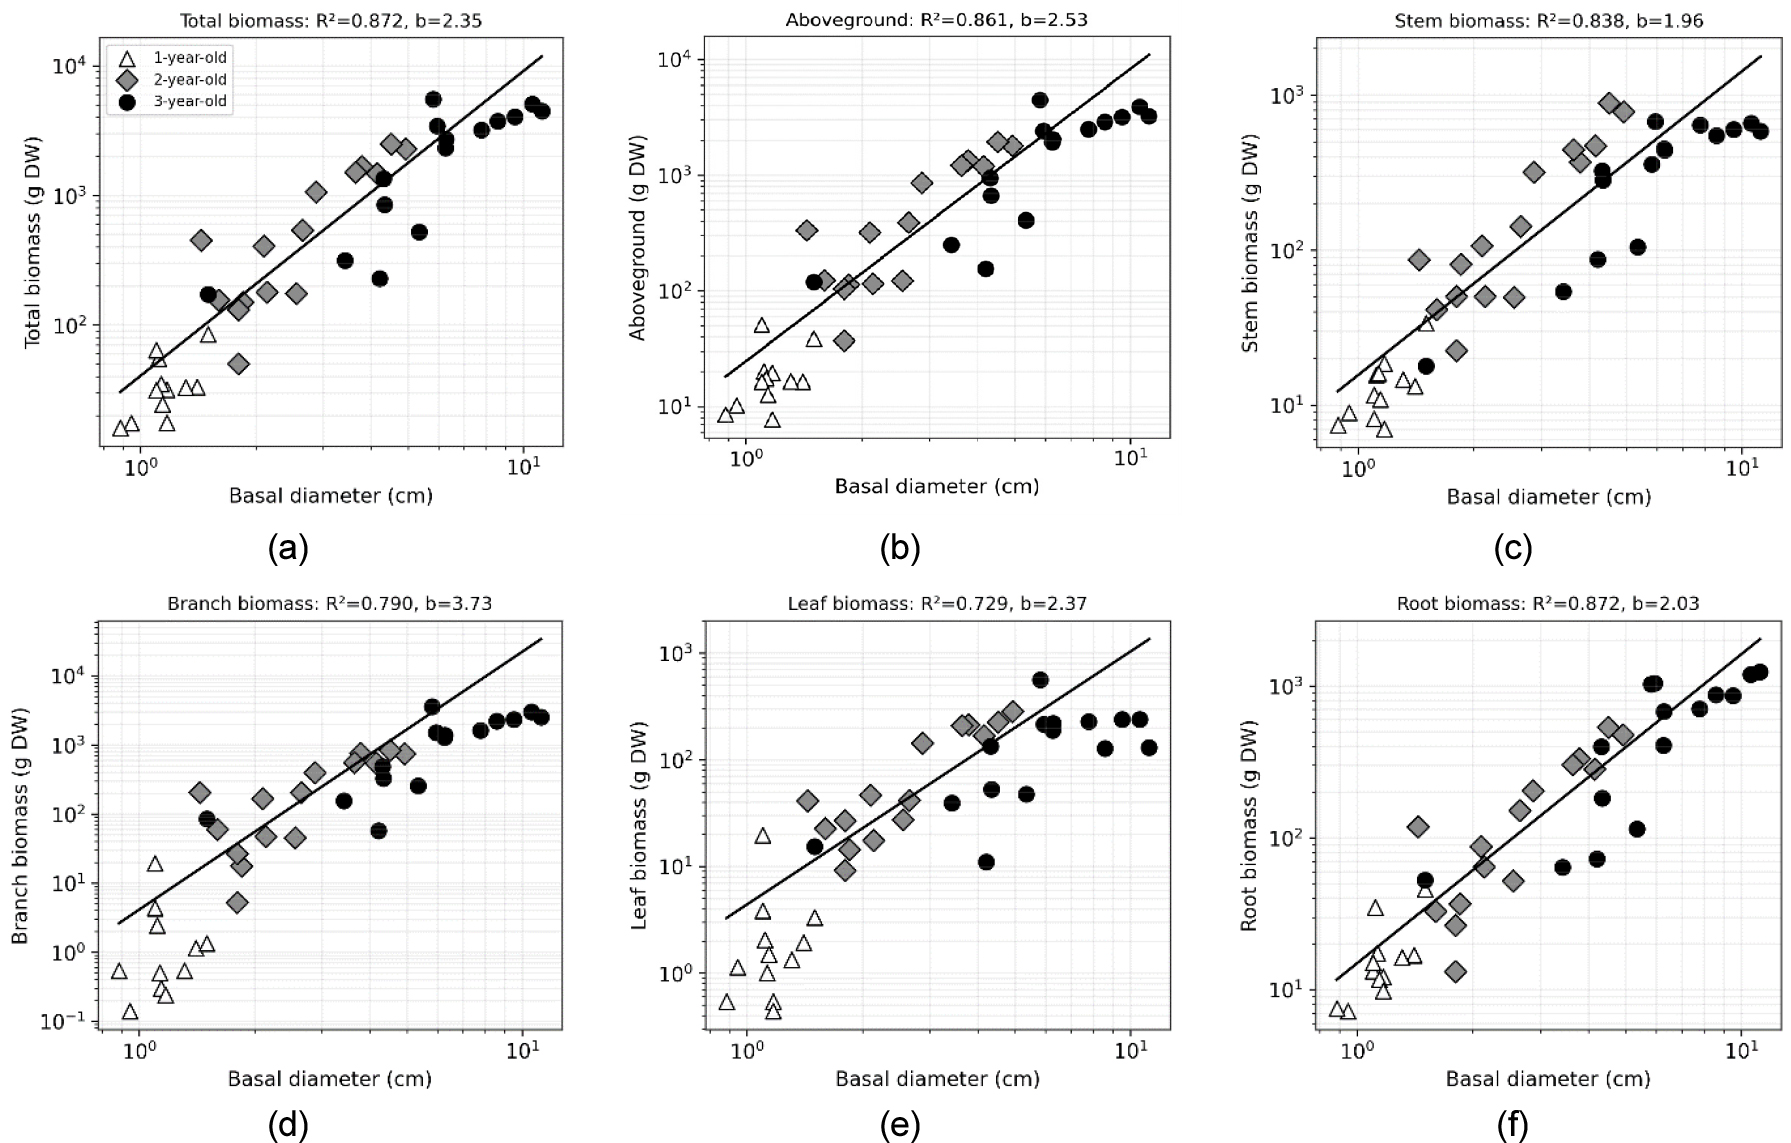
부위별 상대생장 지수(b)를 비교하면, 가지의 상대생장 지수는 3.73으로 총 생물량(2.35)이나 줄기(1.96)보다 뚜렷하게 높게 나타났다. 이는 기저직경 증가에 대해 가지 생물량이 초선형(super-linear)으로 증가함을 정량적으로 보여주는 결과로, 3.1절에서 확인된 가지 우세로의 생물량 배분 전환을 상대생장 지수 수준에서 뒷받침한다. 즉 개체가 커질수록 분지 투자가 가속되는 양상은 광 확보를 위한 개척식물의 생장 전략과 부합한다. 본 연구에서 도출한 상대생장식은 파괴적 수확 없이 기저직경만으로 부위별 및 전체 탄소 축적량을 추정할 수 있는 비파괴적 근거를 제공한다. 다만 가지 방정식은 잔차 분산이 가장 커(Baskerville 보정계수 2.932) 개체 수준 추정 불확실성이 크므로, 상대생장 지수의 해석은 경향 수준으로 제한한다. 또한 적용 범위는 본 연구의 보정 구간(1–3년생, 기저직경 0.89–11.18 cm)에 한정되므로, 보다 큰 개체나 고수령 군락으로의 외삽 시에는 독립적 검증이 필요하다.
3.4 선행연구 통합 재산정 및 수령-밀도 상호작용
선행연구 자료와 본 연구의 자료를 종합하면, 선버들의 증가량 기반 지상부 이산화탄소 흡수량은 0.16–84.08 tCO₂ ha-1 yr-1, 수령 기반 연평균 지상부 이산화탄소 흡수량은 0.12–28.36 tCO₂ ha-1 yr-1로 나타났다(Table 4). 동일 연구 내에서 수고 또는 흉고직경 정보와 이산화탄소 흡수량이 함께 제시된 자료에서는 수고 또는 흉고직경의 증가에 따라 이산화탄소 흡수량도 대체로 증가하는 경향이 확인되었다. 다만 범위의 상한을 이루는 Han et al. (2010) 자료는 수령 및 수목밀도 정보가 제시되지 않아, 수령별 경향 분석에서는 제외하고 보고 범위 제시에만 포함하였다.
Table 4.
Comparison of age, growth characteristics, biomass, production, and CO2 uptake of Salix nipponica (using above-ground biomass only)
| Study | Site | Tree density (trees ha-1) |
Age (yr) |
DBH (cm) |
Height (m) |
Biomass (ton ha-1) |
Age-based averaged annual production (ton ha-1 yr-1) |
Increment- based production (ton ha-1 yr-1) | Age-averaged annual CO2 uptake (tCO2 ha-1 yr-1) |
Increment-based CO2 uptake (tCO2 ha-1 yr-1) |
| Present |
Willow growing site | 4,673 | 1 | - | 1.6 | 0.09 | 0.09 | 0.09 | 0.16 | 0.16 |
| 2 | - | 2.7 | 3.11 | 1.79 | 3.02 | 3.15 | 5.32 | |||
| 3 | 2.2 | 2.9 | 9.04 | 3.52 | 5.92 | 6.20 | 10.43 | |||
| Kim (2024) | Namgangdam reservoir | 5,284 | 5.7 | 6.3 | 7.9 | 3.40 | 0.85 | - | 1.39 | - |
| 4,448 | 11.4 | 10.0 | 8.2 | 71.65 | 12.23 | - | 19.81 | - | ||
| 4,600 | 17.2 | 10.9 | 11.4 | 122.69 | 17.37 | - | 28.36 | - | ||
| Cho (2012) | Nakdonggang river | 121,000 | 2 | - | 0.5* | 1.01 | 0.54* | - | 0.95* | - |
| - | 3 | - | 0.8* | 3.74 | 1.43* | - | 2.51* | - | ||
| 400 | 13 | - | 5.6* | 22.41 | 3.45* | - | 6.08* | - | ||
| - | 15 | - | 6.8* | 19.30 | 2.82* | - | 4.97* | - | ||
| Han et al. (2010) | Janghang wetland | - | - | - | - | - | - | 47.77 | - | 84.08* |
| Kim (2006)* | Topyeongcheon stream | 300 | 5 | 2.4 | 3.2 | 0.16* | 0.07* | - | 0.12* | - |
| 6 | 3.5 | 4.8 | 0.43* | 0.18* | - | 0.31* | - | |||
| 7 | 4.1 | 4.7 | 0.54* | 0.16* | - | 0.28* | - | |||
| 8 | 5.2 | 5.0 | 0.96* | 0.22* | - | 0.39* | - | |||
| 9 | 7.2 | 6.2 | 1.94* | 0.45* | - | 0.79* | - | |||
| 10 | 7.9 | 5.6 | 2.05* | 0.46* | - | 0.81* | - | |||
| 11 | 10.4 | 6.5 | 4.16* | 0.84* | - | 1.47* | - | |||
| 13 | 14.0 | 7.2 | 6.15* | 0.99* | - | 1.75* | - | |||
| Kim et al. (1999) | Baksilnup wetland | 6,140 | - | - | - | - | - | 25.30 | - | 44.53* |
* Asterisked values were calculated in this study from data reported in the corresponding previous studies; others are reported values. For Cho (2012), heights were estimated from the age-specific nonlinear logistic regression; for Kim (2006), biomass was obtained by applying quadrat-based density to age-specific mean individual biomass. CF = 0.48 (IPCC 2006) applied where not reported. The tree density shown for the present study (4,673 trees ha-1) is not a measured value at the experimental plantation but the representative density reported by Kim (2024); the measured tree densities in the plantation were approximately 3,625 and 3,156 trees ha-1 for the 2- and 3-year-old plantation, respectively. Han et al. (2010) is reported without stand age or tree density and is therefore included only in the reported range, not in the age-related trend analysis.
본 연구에서 산정한 1–3년생 선버들의 이산화탄소 흡수량을 수령 자료가 있는 동일 수종 및 산림 수종의 이산화탄소 흡수량과 비교하였다(Fig. 8). 동일 수종의 현장조사 자료(Kim 2006, Cho 2012, Kim 2024)와 비교한 결과, 본 연구에서 확인된 수령에 따른 이산화탄소 흡수량 증가 경향은 현장조사를 수행한 선행연구에서도 대체로 유사한 경향을 보였다. Kim (2006)은 수목밀도 300 trees ha-1를 적용하여 이산화탄소 흡수량이 비교적 낮게 나타났으나 수령 증가에 따라 대체적으로 증가하였다. Kim (2024) 역시 유사한 수준의 수목밀도를 적용하였으며, 수령 증가에 따른 이산화탄소 흡수량 증가가 확인되었다. Cho (2012)에서는 13년생까지 본 연구 및 Kim (2006), Kim (2024)과 유사한 경향이 나타나 수령 증가에 따라 이산화탄소 흡수량이 완만하게 증가하였으나 15년생에서는 감소하였다. 이는 수목밀도가 2년생 121,000 trees ha-1에서 13년생 400 trees ha-1 수준으로 크게 감소하였음에도 13년생까지는 개체 생장에 따른 생산량 증가 효과가 수목밀도 감소의 영향을 상회하였으나, 이후에는 수목밀도 감소의 영향이 상대적으로 크게 작용하였기 때문으로 판단된다. 따라서 선버들의 지상부 이산화탄소 흡수량은 수령 증가에 따른 개체 생장뿐 아니라 수목밀도에도 크게 영향을 받는 것으로 해석된다. 본 연구는 Kim (2024)에서 제시한 수목밀도 자료를 전 수령에 동일하게 사용하였으므로, 3년생 이후에도 수령 증가에 따라 생산량과 지상부 이산화탄소 흡수량이 증가할 가능성이 높다. 증가 정도는 수령 구간별로 일정하지 않을 것으로 예상되며, 초기 수령 구간에서는 증가폭이 크게 나타날 수 있으나 이후에는 생장량 증가폭의 변화에 따라 생산량과 이산화탄소 흡수량의 증가폭도 달라질 것으로 예상된다.
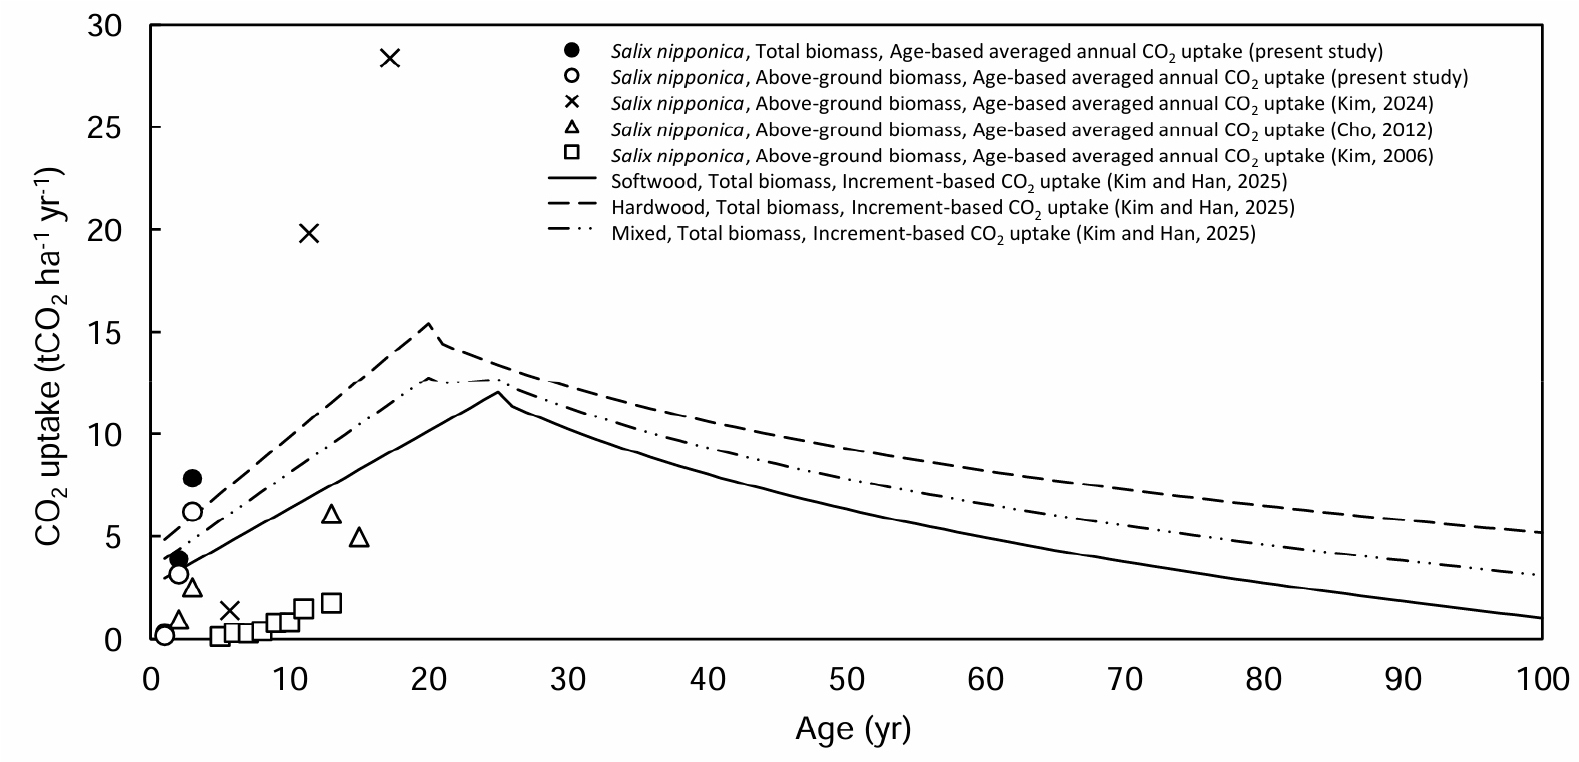
Kim and Han (2025)에서 제시한 활엽수림, 침엽수림 및 혼효림의 증가량 기반 총 이산화탄소 흡수량과 본 연구에서 산정한 선버들의 이산화탄소 흡수량을 함께 제시하였다(Fig. 8). Kim and Han (2025)의 산림수종 자료는 수종 및 수령별 증가량 기반 총 이산화탄소 흡수량인 반면, 본 연구의 선버들 자료는 직접수확 생물량을 이용하여 산정한 값으로 산정 기준이 서로 다르다. 따라서 두 자료를 동일 기준으로 직접 비교하거나 배수(倍數)로 환산하는 것은 적절하지 않으며, 본 연구에서는 배수 비교를 제시하지 않는다. Fig. 8은 초기 생장 단계 선버들의 이산화탄소 흡수량이 산림수종의 초기 수령 구간과 대체로 유사한 크기 범위에 위치함을 보이기 위한 참고 자료로 해석되어야 한다.
4. 결 론
본 연구에서는 기후변화에 따른 수문학적 극한 상황을 고려한 수변 식생 기반 하천적응관리의 구체적 방안을 수립하기 위한 선버들의 탄소흡수량 산정의 정량적 근거를 제시하고자, 장기 모니터링이 진행 중인 선버들 생육장에서 선버들의 이산화탄소 흡수량을 수령에 따라 정량적으로 추정하였다. 이를 통해 수령 증가에 따른 생물량 및 이산화탄소 흡수량의 변화를 체계적으로 규명하고, 선버들의 생장 특성과 탄소 흡수 잠재력에 대한 기초 자료를 제공하였다.
직접수확을 통해 확보한 생물량 자료는 IPCC (2006) 지침에 기반한 측정 기반 접근에 해당하며, 이를 바탕으로 초기 생장 단계 선버들의 탄소흡수 특성을 검토하였다. 또한 생육 기간의 한계를 보완하기 위해 현장 기반 선행연구 자료를 함께 종합함으로써, 본 연구의 1–3년생 자료에 한정되었던 검토 범위를 확장하고 선버들의 이산화탄소 흡수 특성을 보다 넓은 수령 범위에서 확인하였다.
선버들 생육장에서 초기 생장 단계의 선버들은 수령 증가에 따라 생물량, 생산량 및 이산화탄소 흡수량이 전반적으로 증가하는 경향을 보였다. 직접수확을 통해 확보한 생물량 자료는 1–3년생 구간에서 수령에 따른 뚜렷한 차이를 보였으며, 이러한 양상은 수령에 따른 생산량 및 이산화탄소 흡수량 변화에서도 일관되게 나타났다. 또한 선버들의 생장 양상은 연령 구간에 따라 차이를 보여, 1–2년생 구간에서는 수고와 기저직경이 함께 증가하였고 2–3년생 구간에서는 기저직경 증가가 상대적으로 두드러졌다. 기관별 생물량 배분은 1년생의 뿌리 우세에서 2–3년생의 가지 우세로 전환되었으며, 이러한 배분 전환은 개체별 자료로 도출한 상대생장식에서 가지의 상대생장 지수가 총 생물량보다 뚜렷하게 높게 나타나는 것으로도 확인되었다. 도출한 상대생장식은 로그 변환 기준으로 총 생물량과 지하부 생물량을 모두 R2 = 0.872 수준으로 설명하여, 파괴적 수확 없이 기저직경만으로 초기 생장 단계 선버들의 평균 탄소 축적량을 추정할 수 있는 근거를 제공한다. 다만 leave-one-out 교차검증에서 개체 단위 예측오차(MAPE)가 87.5%로 크게 나타났으므로, 적용 범위는 개체별 정밀 추정이 아니라 군락 평균 추정으로 한정된다.
선버들 생육장에서 수확한 선버들의 일년생을 제외한 수령 구간에서 증가량 기반 이산화탄소 흡수량은 수령 기반 연평균 이산화탄소 흡수량보다 높게 산정되었다. 이는 왕성한 생장이 이루어지는 수령 구간에서 해당 시기의 증가량 기반 연평균 이산화탄소 흡수량이 식재 이후 해당 수령까지의 평균 흡수량보다 크게 나타날 수 있음을 시사한다. 선행연구에서 제시된 선버들의 이산화탄소 흡수량은 주로 수령 기반 연평균값이거나 이를 산출할 수 있는 생물량 자료에 근거하므로, 생물량 증가폭이 큰 수령 구간에서는 증가량 기반 이산화탄소 흡수량이 수령 기반 연평균 흡수량보다 높게 나타날 가능성이 있다. 따라서 선버들의 이산화탄소 흡수량을 비교할 때에는 수령 기반 연평균 이산화탄소 흡수량과 증가량 기반 이산화탄소 흡수량을 함께 고려할 필요가 있다.
아울러 본 연구는 실규모 격자형 버드나무 생육장이라는 관리된 조건에서 선버들의 생육 특성을 안정적으로 확보하고, 수령에 따른 생장 특성 및 이산화탄소 흡수량 변화를 정량적으로 제시하였으며, 종 고유 상대생장식을 통해 비파괴적 추정의 근거를 마련하였다는 점에서 의의가 있다. 생육장에서 수집된 수령별 생물량, 생산량 및 이산화탄소 흡수량 자료와, 수령 범위의 한계를 보완하는 현장 기반 선행연구의 종합 결과는 향후 선버들 자료 축적과 장기 모니터링 결과 간 비교를 위한 기초 참고자료로 활용될 수 있다. 특히 수령에 따른 이산화탄소 흡수량의 변화 양상과 기저직경 기반 추정식을 제시함으로써, 수변 식생의 탄소흡수 기능 평가를 위한 기초자료로 활용될 수 있다.
다만 본 연구는 식재 밀도를 처리 변수로 설정하지 않았으므로, 밀도 수준에 대한 설계 처방을 직접 도출할 수는 없으며, 한정된 수령 범위와 조사 지점을 대상으로 수행된 결과에 기반하고 있으므로, 다양한 수령대와 실제 하천 환경에서 나타나는 조건을 충분히 반영하는 데에는 한계가 있다. 또한 선행연구와 본 연구에서 적용된 CF는 선버들 고유값이 아니라 IPCC (2006)에서 제시하는 탄소전환계수에 기반하므로 최종 이산화탄소 흡수량 추정에 일정한 불확실성이 포함될 수 있기에, 민감도 분석 결과 그 크기는 3년생 총 흡수량 기준 약 ±6% 수준이었다. 향후에는 장기 모니터링과 다양한 수령대를 포함한 생물량 자료의 지속적인 확보를 통해 보다 신뢰성 높은 데이터 축적이 필요하다. 또한 실제 하천 환경에서 수목의 탄소 저장량에 대한 대규모 조사와 검증이 병행되어야 하며, 이를 바탕으로 수변환경 조성 및 관리 전략을 체계적으로 수립하는 것이 중요하다. 아울러 선버들을 대상으로 한 직접 원소분석을 통해 종 고유의 CF를 산정하고, 이를 이산화탄소 흡수량 산정에 적용할 필요가 있다. 특히 1년생 표본목은 야외 이식 선발 기준(수고 40 cm 이상)에 미달하여 온실에 재보관된 개체군에서 선정되었고 화분 조건에서 생육하였으므로, 1년생 생물량이 과소평가되었을 가능성이 있다. 이 경우 1년생 이산화탄소 흡수량은 낮게, 2년생의 증가량 기반 흡수량은 상대적으로 높게 산정되므로, 본 연구에서 제시한 두 산정 방식 간 격차의 크기는 상한값으로 해석하는 것이 타당하다. 또한 본 연구는 단일 생육장을 대상으로 수행되어 처리 반복이 없고 수령 간 차이에 대한 통계 검정을 수행하지 않았으므로, 수령 간 비교는 기술통계 수준의 경향으로 제한된다. 아울러 단위면적당 값은 타 연구의 수목밀도를 적용한 환산값이므로 절대값보다 상대적 비교에 활용하는 것이 적절하다.